Particolarità
Varianti di colore, mutazioni e ibridi
Un allevamento non è solo un luogo dove gli animali si riproducono: è anche un luogo di osservazione, dove si impara guardando. Qui trovi le varianti di colore che alleviamo e selezioniamo, come sono nate, come si ereditano, e il lavoro sugli ibridi di Testudo graeca e Testudo marginata. Ho cercato di spiegare le cose con semplicità, ma senza semplificare ciò che semplice non è.
Cosa sono · Albinismo e leucismo · Hermanni · Marginata · Un po’ di genetica · Ibridi
Cosa sono le varianti di colore
Ogni essere vivente ha le sue caratteristiche esteriori: forma, dimensioni, colori e disegno. Colori e disegni sono nati per due scopi quasi opposti: confondersi con l’ambiente oppure farsi notare, per avvertire un predatore o per attrarre un partner. Quale che sia il disegno, esso è regolato da una moltitudine di geni che, come tutti gli altri, vanno incontro a mutazioni spontanee con una certa frequenza. Le mutazioni che migliorano un aspetto favorevole tendono a diffondersi e a mantenersi, le altre restano rare o scompaiono.
Nei rettili la colorazione della pelle dipende da quattro tipi di cellule pigmentate: xantofori, eritrofori, iridofori e melanofori (Kuriyama et al. 2020, descritte soprattutto in lucertole e serpenti). Le varianti seguono spesso semplici schemi di eredità mendeliana (Olsson et al. 2013), ed è per questo che con pazienza si possono selezionare. I pigmenti, poi, sono molti: l’eumelanina, nero-bruna, e la feomelanina, rossastra, seguono vie metaboliche diverse e ciascuna può mancare, essere ridotta o modulata. Da qui l’infinita varietà di colori che vediamo in natura.
Albinismo e leucismo: non sono la stessa cosa
Capita di sentir dire che albino vuol dire bianco con gli occhi rossi. Non è così, ed è un errore che porta a confondere forme molto diverse.
Albinismo. È la carenza o l’assenza di melanina, e ne esistono diverse varianti. Può essere parziale, interessare solo alcune strutture, come gli occhi, o dare un mosaico. Quel che conta è specificare quale sia il deficit. Nell’albinismo le cellule che producono il pigmento ci sono e sono perfettamente formate, ma una mutazione lungo la catena di reazioni che porta al colore impedisce di completare il percorso.
Leucismo. L’assenza di pigmento è dovuta a una mutazione che impedisce la formazione o la sopravvivenza delle cellule deputate a produrlo. L’iride, però, può restare pigmentata, perché la via metabolica negli occhi rimane integra.
| Albino T- | Albino T+ | Leucistico | |
| Cosa non funziona | la tirosinasi, il primo passaggio della catena | un altro passaggio: la tirosinasi funziona | mancano o non sopravvivono le cellule del pigmento |
| Melanina | assente per tutta la vita | assente alla nascita, poi si accumula | assente nelle aree bianche |
| Occhi | rossi: si vede il sangue sotto i tessuti | rossi alla nascita, poi nocciola chiaro | pigmentati, di colore normale |
| Esempio | hermanni albina | marginata albino caramello | piebald di boettgeri |
Un parallelo con l’uomo e con gli uccelli
La stessa logica si ritrova in medicina. Nell’albinismo oculocutaneo dell’uomo la forma OCA1A, in cui la tirosinasi è del tutto inattiva, non produce melanina in nessun momento della vita. Nelle forme OCA1B e OCA2, quest’ultima storicamente detta tirosinasi-positiva, un po’ di pigmento si accumula nel tempo e capelli e occhi possono scurirsi con l’età (OMIM #203200; Grønskov et al. 2007). È un comportamento che ricorda molto quello dei nostri albini caramello.
Una precisazione sulle parole. In ornitologia Hein van Grouw (2006, 2021) riserva il termine albino all’assenza totale di melanina per mancanza dell’enzima chiave, e distingue con altri nomi le forme parziali. In medicina e nei rettili si usa invece albinismo anche per le forme parziali, specificando quale. Per questo, quando parlo di albino, preciso sempre se è T- oppure T+.
Testudo hermanni: albina, isabella e piebald
Testudo hermanni hermanni · albino T-
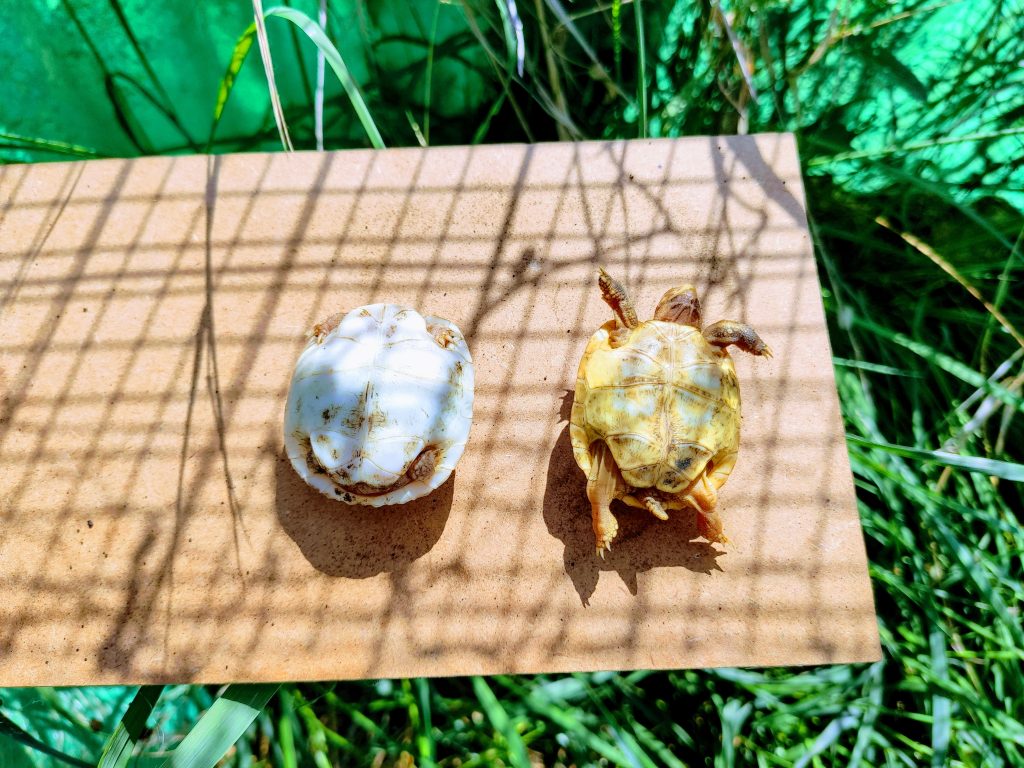
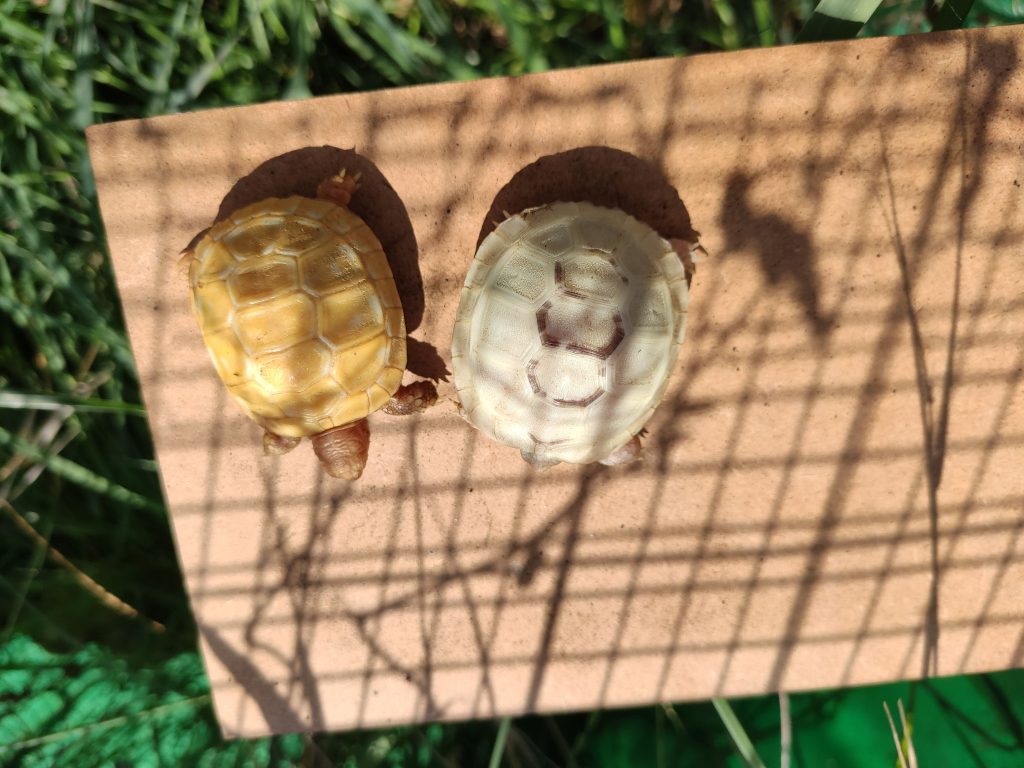
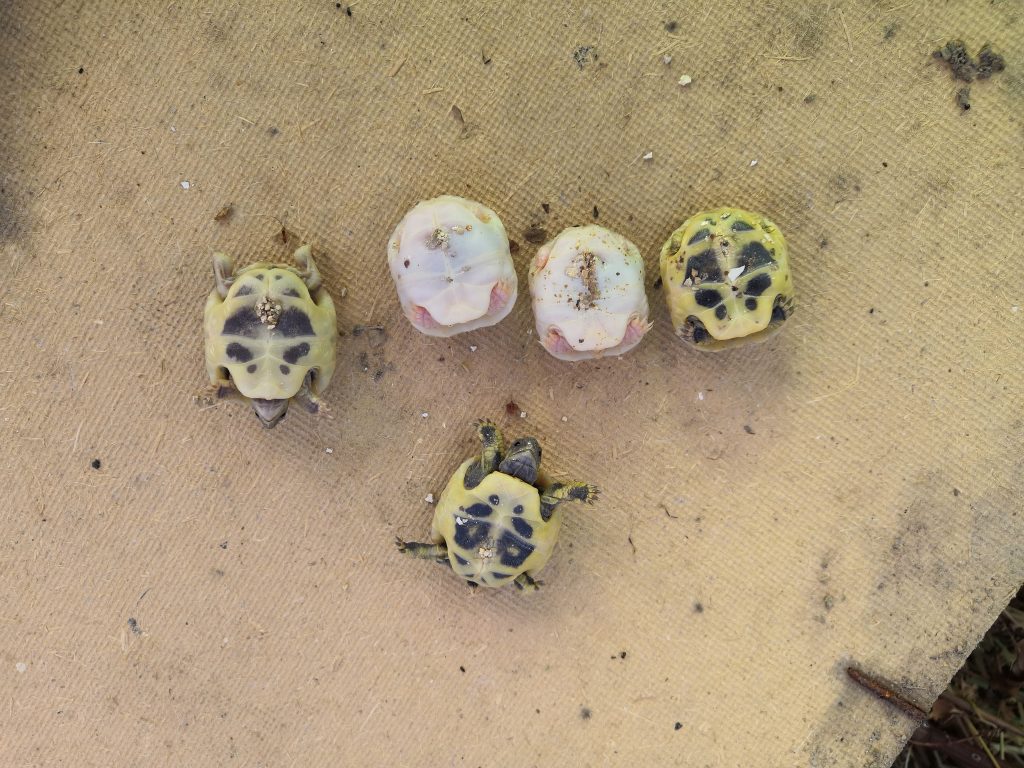
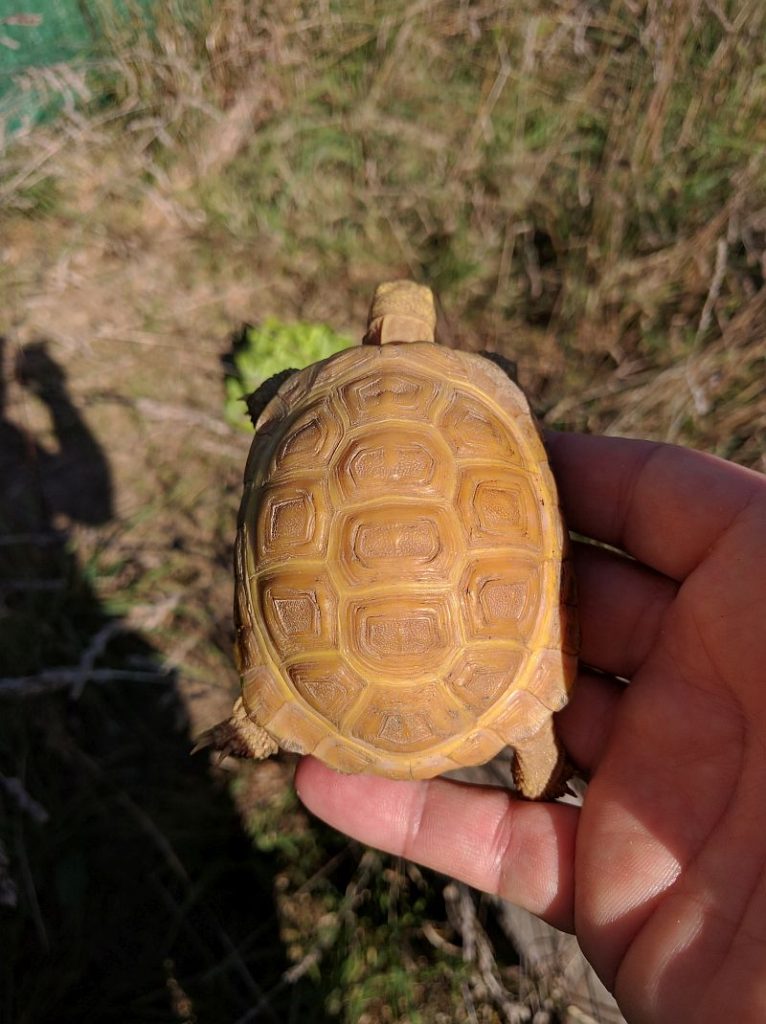
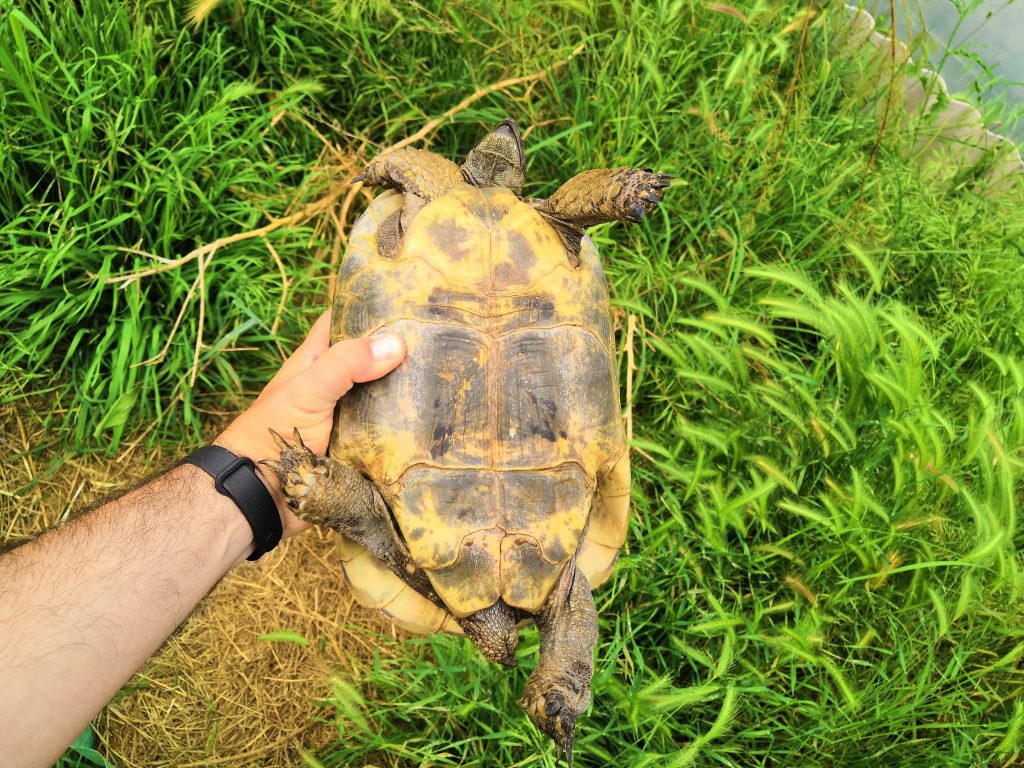
Nella Testudo hermanni sono noti, e in qualche caso selezionati con successo, esemplari albini T-, seppure con numeri bassissimi, per la limitata produttività della specie e i lunghi anni necessari per raggiungere l’età riproduttiva. L’esemplare classico ha una base gialla. Alla nascita le aree in cui dovrebbe esserci il disegno scuro sono di un bianco candido, e sembra quasi il negativo di una fotografia. Da adulto il carapace è giallo-dorato uniforme.
L’impossibilità assoluta di produrre melanina lascia l’iride priva di pigmento: gli occhi appaiono rossi, rubino, perché lasciano vedere i tessuti sottostanti irrorati dal sangue. In cattività questi mutanti non mostrano particolari deficit, se non una maggiore sensibilità dell’occhio alla luce intensa, che li porta a un comportamento leggermente diverso, e una ridotta efficienza di termoregolazione. Il calore del sole è assorbito più facilmente dalle colorazioni scure, e gli animali chiari impiegano più tempo a raggiungere le temperature fisiologiche al risveglio dal letargo, in autunno o con poco sole. Non a caso, ad altitudini maggiori o in climi freddi i rettili hanno un disegno mediamente più scuro, mentre nei climi caldi il disegno si riduce, anche all’estremo. Le graeca golden ne sono il classico esempio, e con l’albinismo non hanno nulla a che fare.
Albino T-Occhi rubinoAutosomico recessivoTestudo hermanni hermanni · isabella
Un’altra mutazione trovata in natura in Testudo hermanni hermanni, con una frequenza elevata, è una forma in cui il disegno tipico risulta più o meno fortemente sfumato. Per prendere in prestito una parola dal soprannaturale, l’ho chiamata fantasma, ghost, ma la definizione più appropriata è isabella. Il carapace è giallo-dorato con un disegno fantasma più o meno marcato; gli occhi sono nocciola, mai rubino, ed è il modo più rapido per distinguerla da un albino T-.
È una mutazione autosomica recessiva: si manifesta solo se entrambe le copie del gene sono mutate, mentre chi ne porta una sola copia appare normale. A differenza dell’albino T-, essendo una lieve modulazione del colore, non cambia il comportamento né la termoregolazione. Molti allevatori avranno le prime riproduzioni nei prossimi anni, ed è prevedibile che in un tempo ragionevole questa variante diventi abbastanza comune.
Un dato che dimostra l’indipendenza genetica. Incrociando una isabella con un albino T- non nasce nessun albino e nessuna isabella: i piccoli sono tutti di colorazione normale, doppi eterozigoti. Le due mutazioni stanno quindi su geni diversi e non si compensano. È lo stesso schema descritto nel pitone reale: le morph albino, lavender albino e ultramel sono recessive e non alleliche, e gli incroci tra loro danno prole normale (Brown et al. 2022).
IsabellaOcchi nocciolaAutosomico recessivoTestudo hermanni boettgeri · leucistico piebald
È una forma rarissima: fondo chiaro con macchie scure residue e isolate, con l’occhio normalmente pigmentato. Qui il difetto non sta nella sintesi del pigmento, ma nelle cellule che dovrebbero produrlo. Nell’uomo e in molti mammiferi il piebaldismo dipende da mutazioni del gene KIT, che disturbano la migrazione e la sopravvivenza dei melanociti durante lo sviluppo embrionale (Spritz 1997): non è albinismo, perché le cellule delle aree chiare non sono state formate. Nell’uomo si trasmette come carattere dominante; come si trasmetta nella tartaruga è tutto da verificare.
LeucismoUn disegno unico per ogni animaleUna parola sugli esemplari high yellow, abbastanza comuni in boettgeri, nei quali le aree scure del disegno sono estremamente ridotte o assenti. Molti allevatori hanno provato a riprodurli ottenendo immancabilmente prole normale: segno che il pattern deriva da una moltitudine di geni che devono trovarsi in una rara combinazione. In un solo caso a me noto, evidentemente dovuto a una singola mutazione autosomica recessiva, si è riusciti a replicare il pattern amelanico.
Testudo marginata: l’albino caramello
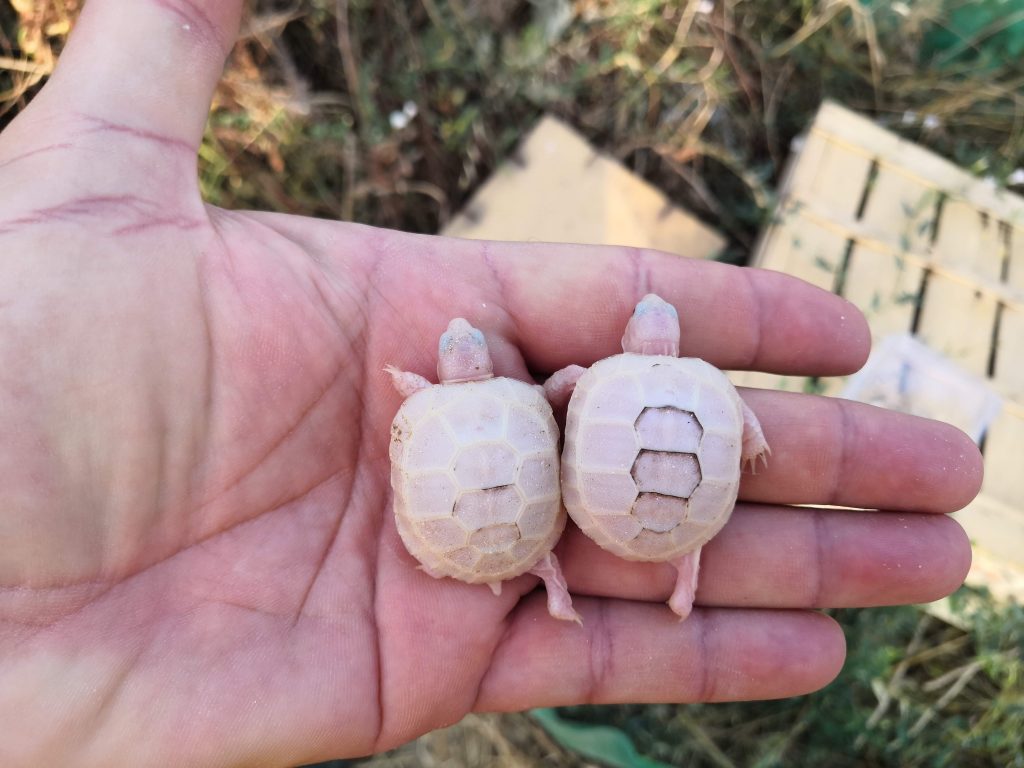
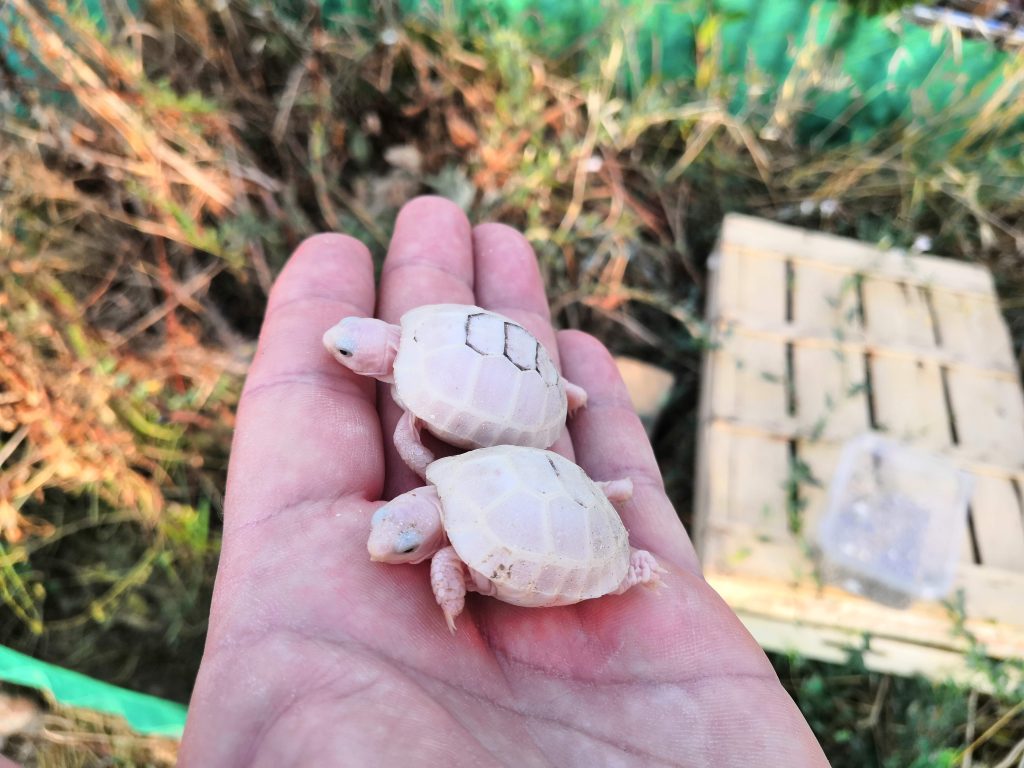
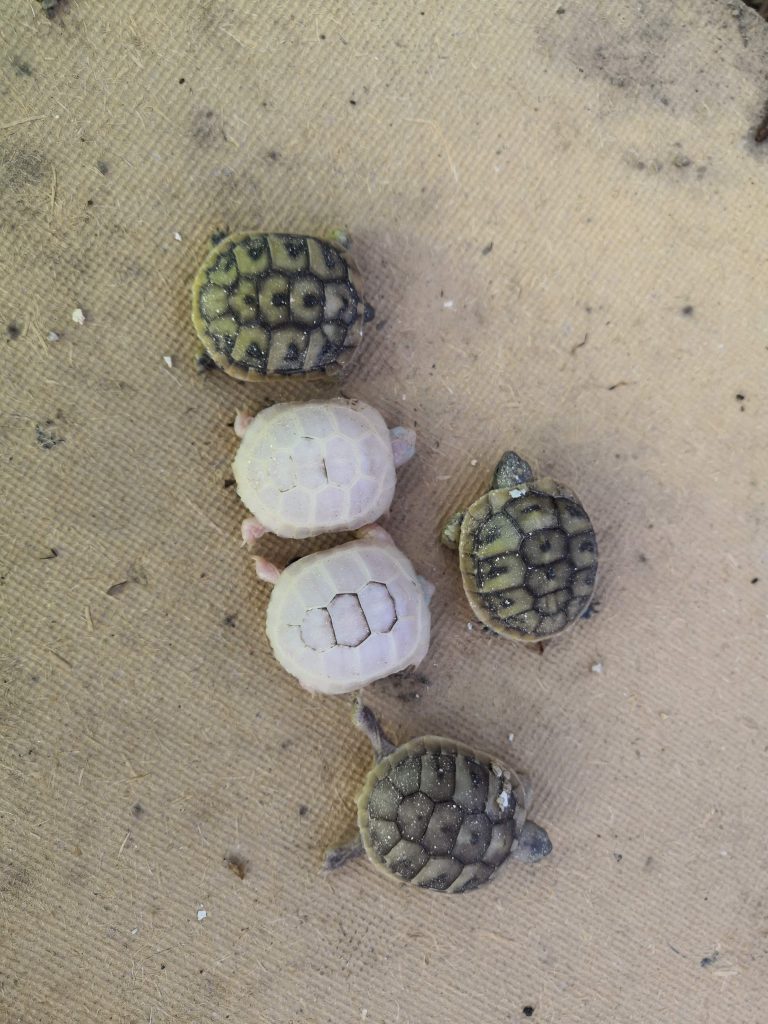
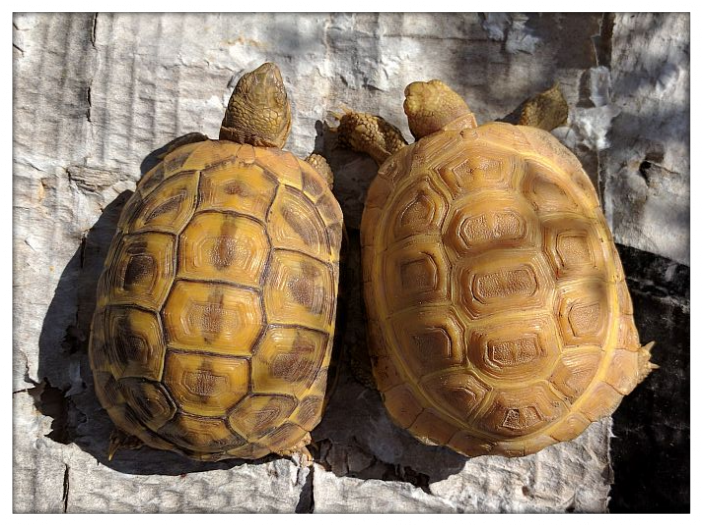
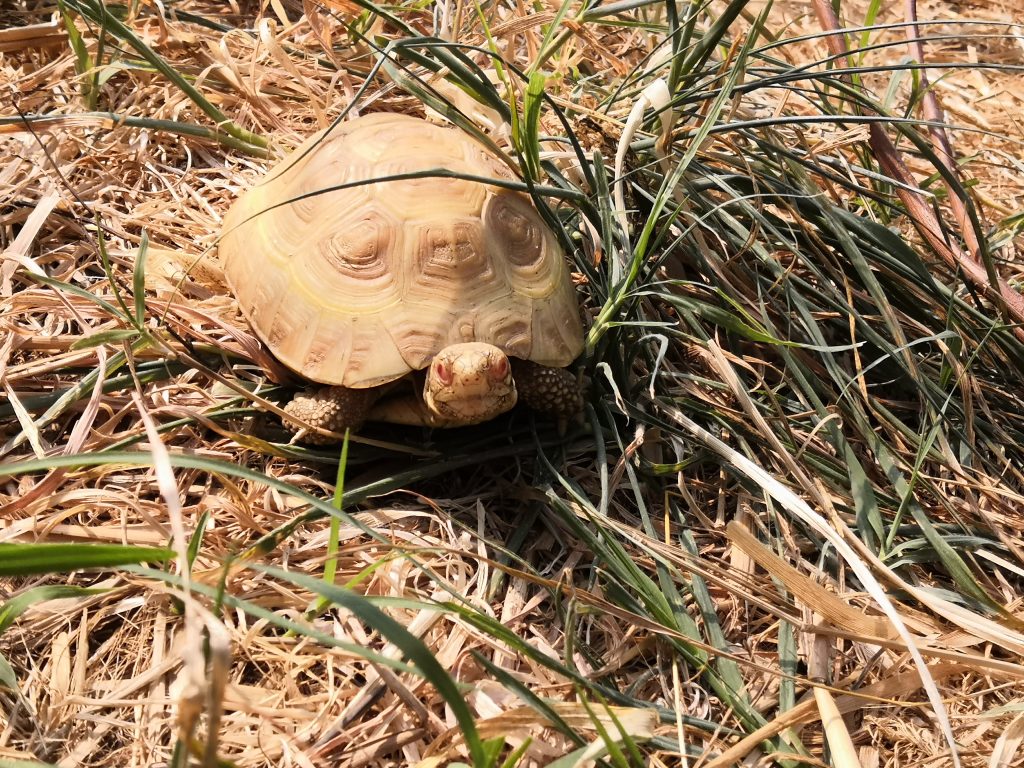
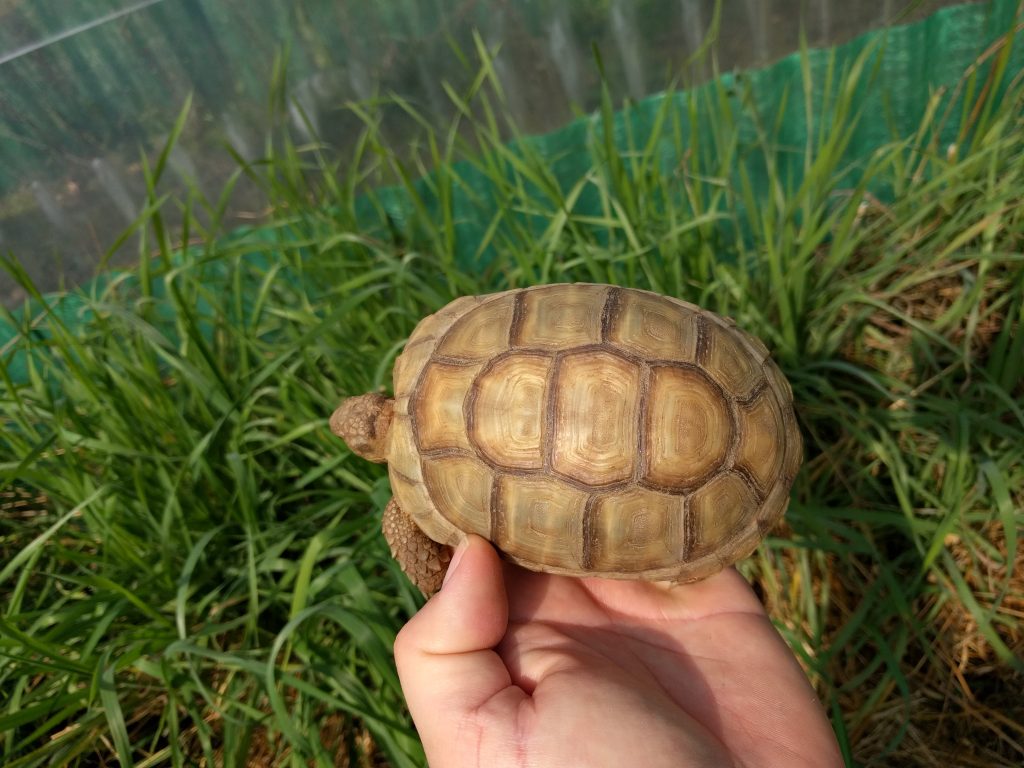
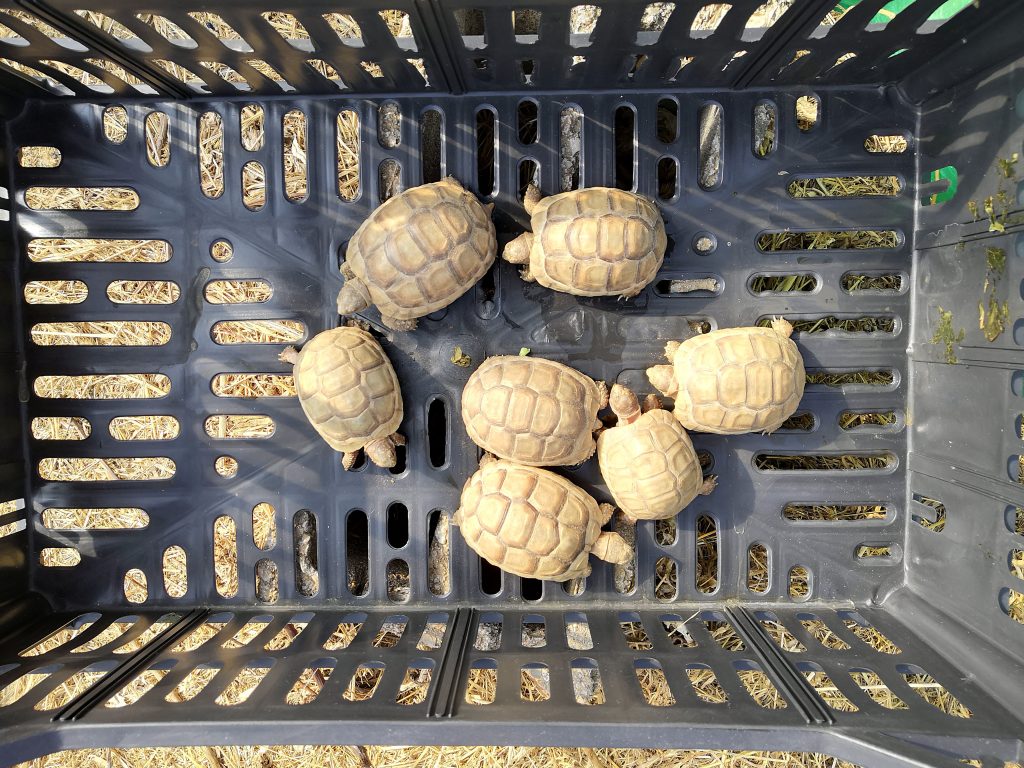
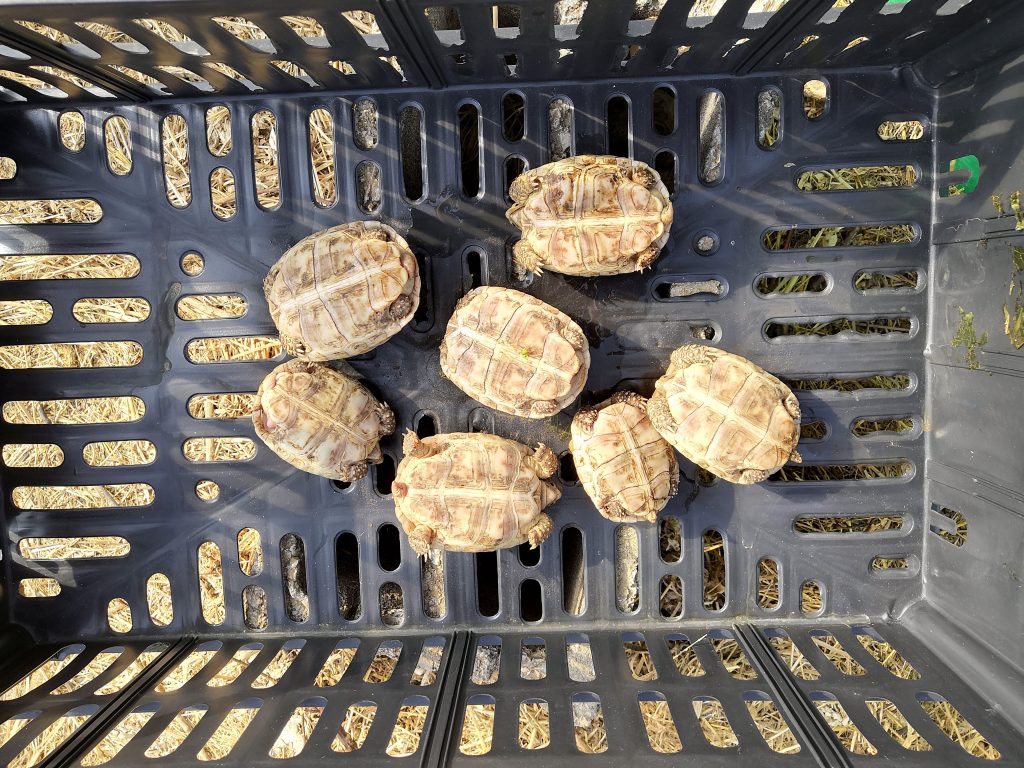
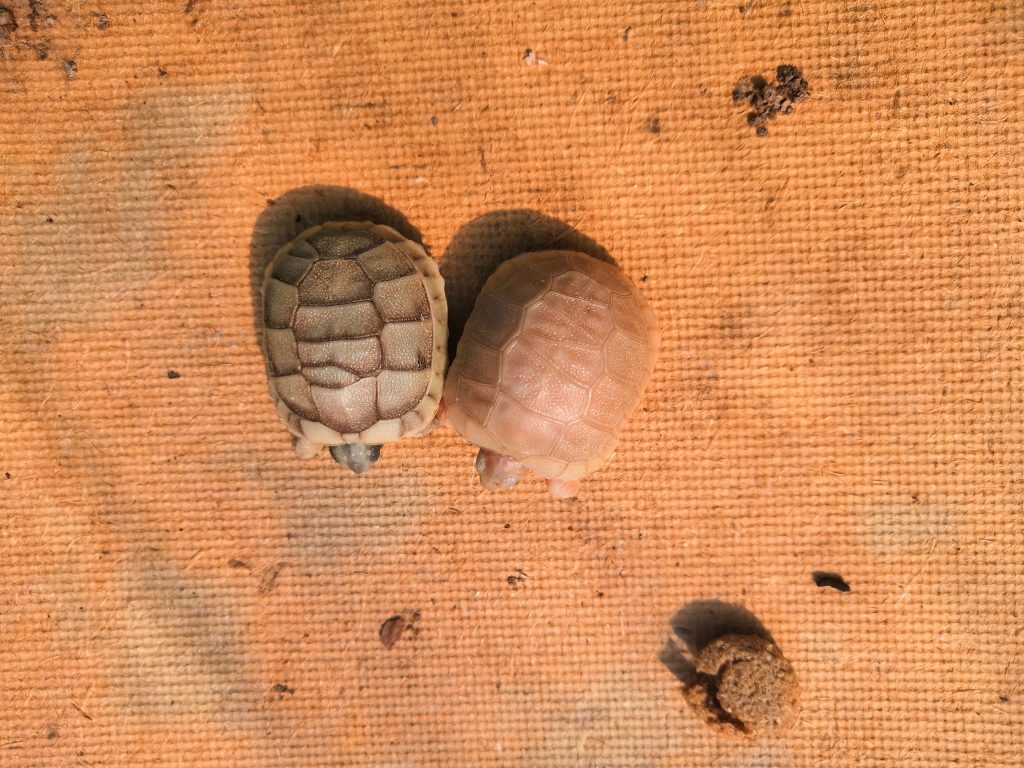
In Testudo marginata l’unica variante di colore al momento nota e riprodotta da decenni è la forma T+, definita albino caramello. È presente in natura con una certa frequenza, soprattutto in Sardegna, ed è registrata, anche se non riconosciuta, in alcune collezioni museali. Nei primi anni di vita l’assenza di pigmentazione riduce l’efficienza di termoregolazione; poi il colore vira verso il caramello e il problema si annulla. L’occhio, inizialmente rosso, tende a restare nocciola chiaro, e non crea problemi di visione alle alte luci come nelle mutazioni in cui resta depigmentato. È l’unica accortezza dei primi anni: garantire all’animale una maggiore protezione finché non raggiunge un minimo di pigmentazione.
Variabilità del colore. Le sfumature del caramello variano naturalmente da un animale all’altro, da toni più chiari e dorati a toni più scuri, e cambiano anche con la crescita: rientrano nella normale variabilità della mutazione. Nelle forniture cerchiamo di venire incontro alle preferenze, compatibilmente con gli animali disponibili, ma una sfumatura precisa non può essere garantita.
La storia della selezione
Il capostipite. Era un maschio raccolto in natura nel nord della Sardegna, nella zona di Olbia, ancora giovane, probabilmente intorno ai 4-5 anni, ai primi anni ’80: lo trovarono i vicini di casa di mio nonno, residenti a Cagliari, che lo portarono con sé in città e lo affidarono a una mia zia. Nel 1988, non ancora adulto ma ben cresciuto, mi fu regalato insieme a una femmina adulta normale. Era di un ocra chiaro, con gli occhi nocciola, completamente privo di colorazione nera.
La femmina eterozigote. Nel 1990 mi regalarono altri esemplari adulti, tra cui la femmina che si rivelò eterozigote, contrassegnata con la lettera N. Veniva dalla zona di Olbia, dove era stata raccolta in natura, come gli altri esemplari di quella provenienza, ai primi anni ’80.
Le prime nascite. Il 10 settembre 1991 nacque in giardino una piccola Testudo marginata bianca come il latte, insieme ad altre 8; pochi giorni dopo, da un uovo della femmina N, ne uscì un’altra con gli occhi color brace. Negli anni successivi nacquero in tutto 14 piccoli albini. Nel 2003, da due piccolissime uova di una figlia della femmina N, nacquero altri due albini: dalla prima nata erano passati dodici anni, ed era stato selezionato il primo ceppo albino di Testudo marginata.
La conferma. Le nascite successive hanno seguito la segregazione attesa: da un incrocio tra un eterozigote e un albino, in media metà piccoli normali e metà albini; da due albini, solo albini. È una mutazione recessiva che segue le leggi di Mendel. I piccoli accumulano pigmenti giallo chiari a partire da un paio di mesi dalla nascita, e gli occhi diventano progressivamente nocciola chiaro.
Sono animali riprodotti da decenni, con 3 generazioni allo stato attuale, e hanno un tasso di sopravvivenza paragonabile a quello del pattern tipico, anche in natura, probabilmente per un certo vantaggio nei terreni brulli con vegetazione secca, dove si mimetizzano meglio. Tutta la scheda della specie è nella pagina Testudo marginata.
Un po’ di genetica di base
Il gene è l’unità fondamentale e funzionale del genoma, ma ridurre tutto a un solo gene, quando parliamo di un carattere, è spesso riduttivo. Una stessa via metabolica coinvolge molti geni, che svolgono reazioni consecutive e concatenate: a seconda del gene mutato cambia l’aspetto dell’animale, anche se in teoria si tratta dello stesso processo. Nel quotidiano delle tartarughe ci troviamo però quasi sempre di fronte a un unico gene mutato, recessivo, che si manifesta solo se la copia materna e quella paterna sono mutate insieme.
Il primo dato importante da capire è questo: l’assenza di un fenotipo mutato non indica l’assenza del gene mutante. Mi spiego meglio. Se il gene mutato è recessivo, in unica copia il gene normale supplisce completamente e l’animale appare in tutto e per tutto normale. Questi individui si chiamano eterozigoti per quel carattere e trasmettono il gene mutato a metà della loro prole. Pensando a un maschio, parliamo di numeri anche molto grandi.
| Incrocio tra due eterozigoti | Piccoli |
|---|---|
| Mutanti, ad esempio albini | 1/4 |
| Eterozigoti, di aspetto normale | 1/2 |
| Normali, senza il gene mutato | 1/4 |
| Tra i piccoli di aspetto normale | 2 su 3 sono portatori |
Si capisce così l’importanza, spesso sottovalutata, degli eterozigoti nella selezione di una variante di colore. Molti si fermano al mutante in sé, ed è il motivo del fallimento di molte selezioni. Molti credono anche che un esemplare di colore normale non possa dare origine a un mutante, o che la nascita di un mutante sia un evento casuale che può uscire da qualsiasi accoppiamento. Chiarire questi meccanismi permette di fare acquisti ponderati: gli eterozigoti costano meno e, con la certezza che lo siano, acquistandoli da un allevamento professionale, sono un modo indiretto ed economico per ottenere la variante desiderata.
Non siamo i soli
- Pitone reale. Tre morph a perdita di melanina, albino (gene TYR), lavender albino (gene OCA2) e ultramel, sono recessive e non alleliche, e gli incroci tra loro danno prole normale (Brown et al. 2022).
- Serpente giapponese Elaphe climacophora. L’albino della linea commerciale porta una mutazione senza senso del gene TYR; un altro albino, trovato in natura ad alta frequenza a Iwakuni, non condivide quella mutazione: due linee albine di origine diversa (Iwanishi et al. 2018).
- Megattera. La balena bianca Migaloo è omozigote per una delezione del gene TYR (Polanowski et al. 2012).
Ibridi di Testudo graeca e Testudo marginata
La ricerca di ibridi è una costante dell’allevamento e dell’agricoltura. Da sempre l’uomo cerca forme intermedie, e ibridi di piante e animali esistono ovunque: molti, come il comune frumento o i suini moderni, non sappiamo nemmeno di averli. Le ibridazioni avvengono spontaneamente anche in natura, con una certa frequenza, e da questi eventi possono nascere persino nuove specie. Non è una condizione aberrante: noi stessi conserviamo nel genoma molteplici eventi di ibridazione con altre specie umane. È uno dei motori dell’evoluzione e permette di portare caratteristiche favorevoli da un organismo all’altro. In un allevamento la ricerca di ibridi ha il solo scopo di aggiungere variabilità, caratteristiche gradevoli e magari maggiore resistenza.
Cosa nasce dall’incrocio
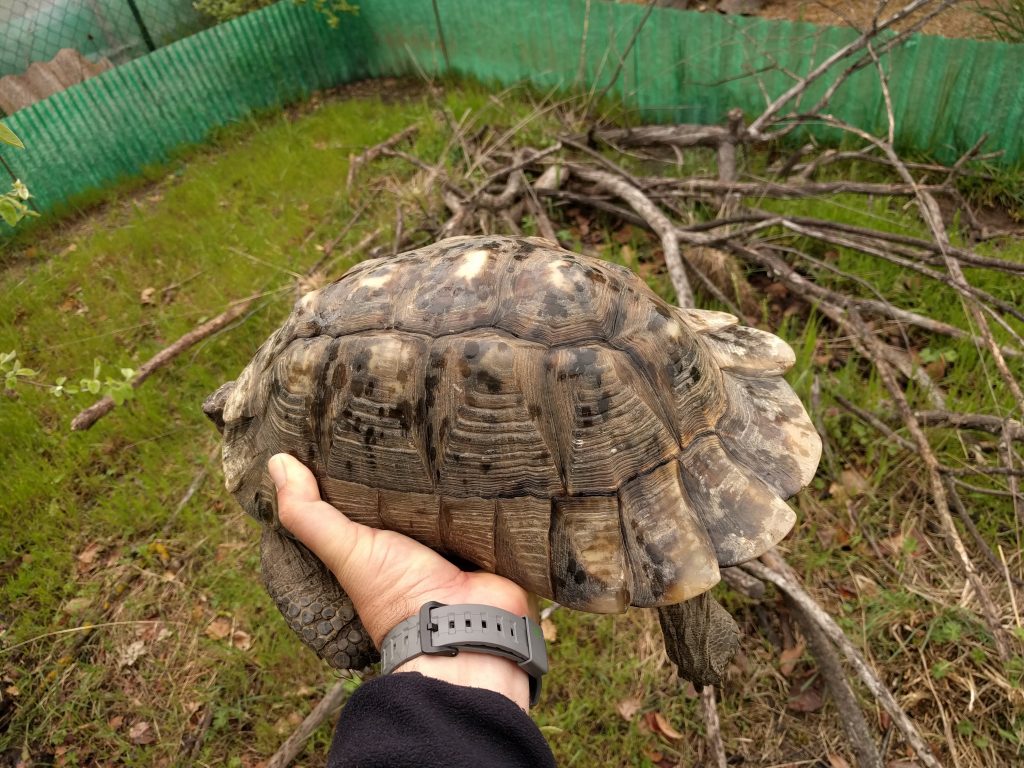
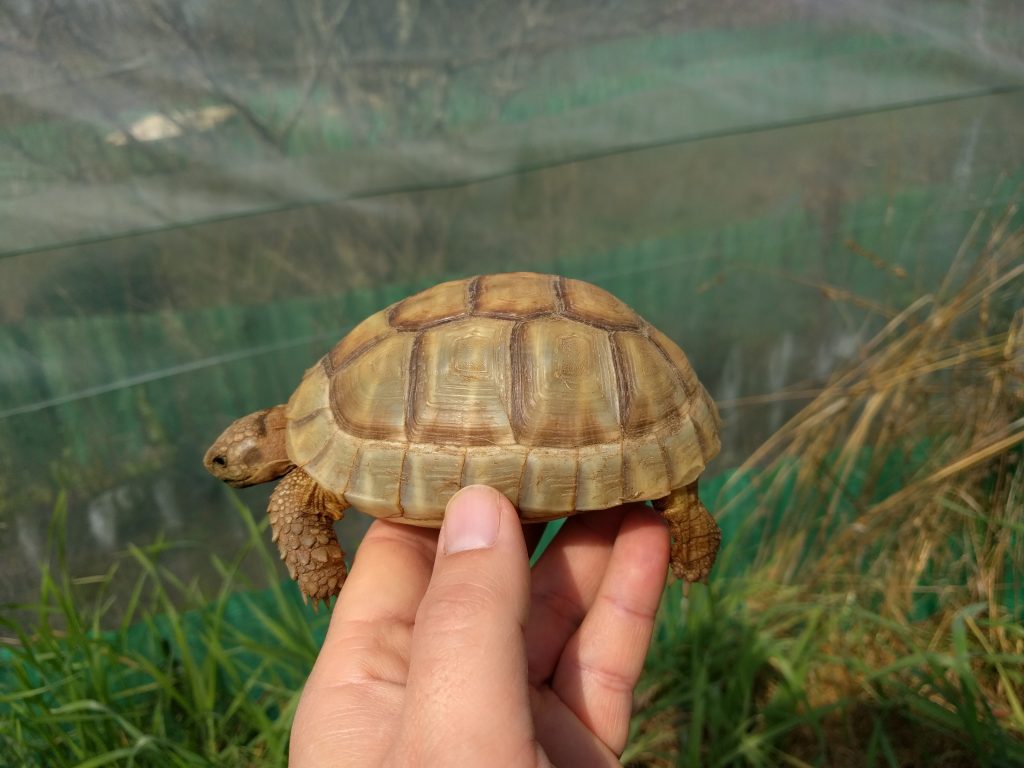
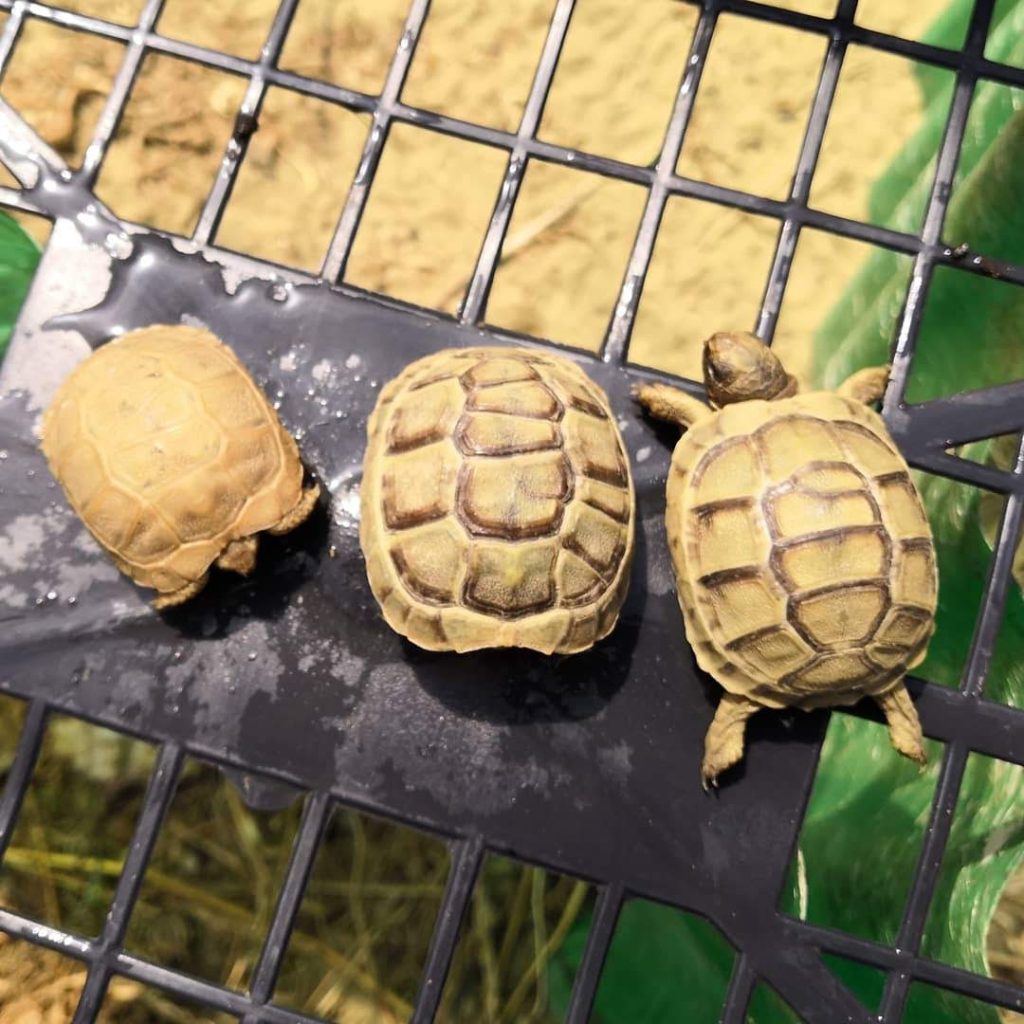
L’incontro tra graeca e marginata produce sempre prole fertile e a sua volta feconda, seppure con qualche evidente limitazione almeno in prima generazione. I piccoli sono facilmente riconoscibili: non presentano né i caratteristici triangoli né altre macchie, e il piastrone alla nascita è sempre privo di disegno, anche se con la crescita possono comparire dei richiami. Colore e disegno del carapace, forma del muso, distribuzione delle squame sulle zampe anteriori e presenza degli speroni tipici della graeca variano invece da individuo a individuo.
Gli ibridi più frequenti sono quelli tra Testudo graeca ibera e Testudo marginata, perché gli accoppiamenti incrociati sono ricorrenti. I piccoli hanno una crescita vigorosa. Mentre in marginata maschio e femmina hanno dimensioni simili, nell’ibrido il maschio resta significativamente più piccolo della femmina, come nella graeca.
Con Testudo kleinmanni ho visto personalmente degli ibridi con la graeca, con le stesse caratteristiche in piccolo; l’ostacolo è puramente dimensionale. Da accoppiamenti tra hermanni e graeca, non impossibili vista la bassa selettività dei maschi di quest’ultima, ho osservato nascite, ma i piccoli presentano spesso gravi malformazioni a occhi, cranio, mandibola e arti, con mortalità elevata e sopravvivenza di uno o due anni al massimo.
Il progetto: l’albino T+ nella graeca
Nel 2005 introdussi nel recinto delle marginata albino caramello una giovane femmina di Testudo graeca ibera nata nel 1994. I maschi di marginata non mostravano alcun interesse per questa pur grossa tartaruga, e per due anni non ebbi nascite; ricorsi quindi all’inseminazione artificiale. Non cercavo numeri, ma solo qualche esemplare per verificare se in F2 si potesse ottenere prole albina grazie al gene mutato della marginata.
I 7 esemplari che nel 2008 arrivarono al secondo anno di vita, selezionati dalla predazione dei ratti, formavano nel 2019 un gruppo di 4 maschi e 3 femmine adulti; le femmine hanno raggiunto dimensioni imponenti, sfiorando i 30 cm di carapace. Ecco cosa è successo in F2:
- 2016. Prima deposizione, una sola schiusa, con una grave malformazione cranica e senza occhi: sopravvisse solo al primo inverno.
- 2017. Le femmine che depongono sono 2, con oltre 30 uova. Si schiude un solo piccolo, perfettamente formato; un altro uovo contiene un embrione quasi completamente sviluppato e albino. È la prima verifica che il gene albino funziona perfettamente anche negli ibridi.
- 2018. Ancora oltre 30 uova: nascono 3 piccoli, di cui uno albino. Tutti vivi e ben cresciuti all’ingresso in letargo, nell’autunno 2019.
- 2019. Record di 4 nascite: due albini perfettamente formati e due esemplari con squame anomale.
La vitalità di questi esemplari è almeno pari, se non superiore, a quella degli esemplari puri. Il problema è l’alta percentuale di fallimenti di schiusa, mentre la percentuale di uova fertili è nella media. Questo fa pensare che il difetto non stia nella fertilità degli animali, ma in problemi dei gameti, aberrazioni cromosomiche o riassortimenti che portano a molti aborti. Come in molti casi analoghi le F1 sono poco fertili, mentre le generazioni successive dovrebbero riacquistare fertilità, ma per rispondere servono ancora diversi anni di osservazioni. I dati di questa scheda arrivano al 2019; quello che è successo dopo è qui sotto.
Dopo il 2019: le analisi genetiche e i reincroci con la graeca
Come stanno le F1. Dei 7 ibridi nati nel 2008 oggi vivono le tre femmine: i quattro maschi sono morti. Due femmine, geneticamente omogenee tra loro, hanno deposto per la prima volta intorno ai 9 anni; la terza, più diversa anche nell’aspetto, solo nel 2024. È probabile che sia figlia di un quarto maschio albino non analizzato, usato nelle inseminazioni.
Che cosa succede tra ibridi. Dall’incrocio tra gli ibridi di prima generazione (F1 × F1) la schiusa non ha superato il 10% e nessun nato è sopravvissuto oltre i due anni. Gli albini sono però risultati più numerosi del 25% atteso da due portatori, su numeri ancora piccoli e quindi da prendere con cautela. L’interpretazione più semplice è che due genomi di specie diverse, mescolati in molte regioni, non si incastrino più: è il modello di incompatibilità di Dobzhansky e Muller. L’eccesso di albini potrebbe dipendere da un blocco di geni della marginata che, attorno al gene albino, funziona bene tutto insieme.
Il reincrocio con la graeca. Le tre femmine F1 si accoppiano liberamente con tre maschi di Testudo graeca ibera puri e non imparentati. In questo caso schiuse e sopravvivenza sono paragonabili a quelle della specie pura, con crescite però disomogenee: è quel che ci si aspetta quando, in quasi ogni regione del genoma, c’è almeno una copia della specie di origine. I piccoli non sono albini, ma metà di loro porta l’allele, ereditato dalla madre: tutti i padri di marginata possibili erano albini, quindi tutte le F1 sono portatrici.
Come abbiamo verificato la discendenza. I campioni sono stati analizzati con un pannello di 15 marcatori microsatelliti, di cui 12 utilizzabili. Negli ibridi tra specie i risultati vanno letti con cautela, per la presenza di alleli nulli e di falsi omozigoti. In due marcatori, TGR77 e TGR149, compaiono alleli nulli strutturali, cioè varianti che non amplificano con i primer disegnati sull’altra specie. Per TGR77 lo dimostra la segregazione mendeliana nei 5 reincroci (χ² = 0,20; p = 0,65). Dieci repliche per ogni campione, da due estrazioni indipendenti, escludono che si tratti di perdite casuali di segnale. Due delle tre madri, inizialmente classificate come reincroci, sono state riportate a F1: l’indice ibrido ne sottostimava la quota di marginata proprio per gli alleli nulli e per l’effetto fondatore.
Un limite da dichiarare. Tutte le marginata dell’allevamento discendono da non più di 8 fondatori. La variabilità interna è quindi ridotta, e gli alleli che consideriamo tipici di marginata lo sono solo rispetto a questa popolazione, non alla specie in natura.
E ora. Restano 4 reincroci, di 4 anni e già di 10 cm o più, che discendono da una linea di ibera di taglia notevole, con femmine tra i 20 e i 28 cm. Quando saranno adulti valuterò di incrociarli tra loro, per confrontare la loro prole con quella della F1 e della F2 e vedere se il crollo cresce con la quota di marginata nel genoma. Terrò traccia delle paternità, per non confondere l’effetto dell’inbreeding con quello dell’incompatibilità tra le due specie.
Scopri le specie
Riferimenti: Kuriyama et al. (2020), Front. Ecol. Evol. 8:232 · Olsson, Stuart-Fox, Ballen (2013), Semin. Cell Dev. Biol. · van Grouw (2006), Dutch Birding 28:79-89 · van Grouw (2021), Bull. Br. Ornithol. Club 141:276-299 · Grønskov et al. (2007), Orphanet J. Rare Dis. 2:43 · OMIM #203200 · Spritz (1997), Semin. Cutan. Med. Surg. 16:15-23 · Brown et al. (2022), PLoS ONE 17:e0276376 · Iwanishi et al. (2018), Genes Genet. Syst. 93:163-167 · Polanowski et al. (2012), J. Hered. 103:130-133.