Varianti di colore di tartarughe
Cosa sono le varianti di colore
Ogni essere vivente, dai più semplici ai più evoluti, ha le proprie caratteristiche esteriori, forma, dimensioni e pattern di colorazione. Quello che li accomuna tutti, è la ricerca di un modo di confondersi con l'ambiente o, di contro, l'esatto contrario. Per far questo, la cuticola, la pelle o strutture ad essa correlate come peli, penne e piume, hanno la caratteristica di presentare disegni e colori paricolari. Essi si sono evoluti allo scopo di rendere riconoscibili ed attraenti fra di loro gli esemplari di una medesima specie, ma anche al fine di mimetizzarsi negli ambienti che frequentano, sia nel caso di prede che di predatori. Poi ci sono animali che invece vogliono farsi riconoscere perchè magari sono velenosi e così avvertono che non è una buona cosa mangiarli o importunarli, oppure altri che li imitano fingendo caratteristiche che non hanno traendone di conseguenza un vantaggio in termini di sopravvivenza. Infine ci sono altri animali dalle forme e colori appariscenti allo scopo di attrarre l'altro sesso. Esempi conosciuti sono il pavone e molti altri uccelli. La logica di selezione è che un esemplare appariscente che si mette in mostra, oltre a garantire una discendenza altrettanto attraente, è evidentemente portatore di doti che gli permettono di sfuggire efficacemente ai predatori nonostante gli evidenti handicap riguardo la mimetizzazione e spesso da impacci di strutture che ne rallentano la fuga.
Quale che sia dunque un particolare pattern esteriore, esso è regolato da una moltitudine di geni che, come tutti gli altri, sono soggetti a mutazioni spontanee con una certa frequenza. Normalmente, mutazioni che vanno a migliorare un aspetto favorevole, tenderanno a diffondersi e mantenersi, mentre tutte le altre avranno meno fortuna e tenderanno a rimanere con una frequenza bassa, oppure a scomparire.
Nello specifico, possiamo riassumere che per esempio nel caso della pigmentazione, esistono molte varianti relative al tipo di colore, fisico e non, bianco, nero, rosso, marrone, verde e loro sfumature. Alcune di queste hanno differenti vie metaboliche, altre sono semplicemente una differente modulazione della stessa, esempi ne sono il rosso (feomelanina) rispetto al nero (eumelanina) nel primo caso, ed il marrone/giallo sempre rispetto al nero nel secondo.
Dobbiamo in fine considerare, perchè spesso erroneamente inserite in discorsi di carenza di pigmento o forme amelaniche, tutte le varianti geniche che determinano un'alterazione di un disegno caratteristico. Il caso estremo è rappresentato dal leucismo, dove l'assenza delle cellule deputate alla produzione di melanina genera un pattern di colorazione completamente candido e bianco, tuttavia la possibilità di produrre melanina si conserva e rimane visibile in altre strutture come l'iride degli occhi. In alcuni casi si hanno veri e propri mosaici con elementi colorati puntiformi dovuti alla presenza sporadica di aggregati di cellule sane. Pertanto, apparenti casi di animali amelanici o con disegno con pochi o nulli spot tipici della specie/sottospecie, di fatto non sono forme di albinismo, ma comunque, andando ad alterare in modo evidente disegno e pattern di un animale, le possiamo comunque far rientrare nella categoria delle varianti di colore, se andiamo a prendere l'organismo nel suo insieme e specifichiamo comunque l'origine differente.
Note ed approfondimenti sulle varianti di colore di Testudo hermanni
Come in tutti gli animali, i rettili e le tartarughe non fanno eccezione, sono molte le varianti di colore possibili, e il loro numero aumenta in funzione della complessità del disegno e delle pigmentazioni che li caratterizzano. Nelle tartarughe troviamo dunque l'albinismo tirosinasi negativo, indicato come T- ne quale il pattern di colorazione è caratterizzato dalla completa assenza di melanina dovuta ad una mutazione che interessa il gene della tirosinasi, il primo step a monte che a partire dall'amminoacido Tirosina, dà il via alla catena di reazioni che lo porta ad acquisire il classico colore nero. Esempio classico è un esemplare di base giallo, in cui almeno alla nascita le aree dove normalmente risiederebbe il disegno scuro si presentano invece in forma bianco cadido, mentre l'impossibilità assoluta a produrre melanina determinano una apigmentazione dell'iride e gli occhi appaiono rossi a seguito della trasparenza che mostra i tessuti sottostanti irrorati dal sangue. Ovviamente, è la quantità di melanina prodotta e depositata nelle strutture cellulari che nei rettili prendono il nome di cromatofori a determinarne il grado e l'intensità, dal nero più intenso e diffuso, al marroncino sfumato, quasi un'ombra sbiadita. Ciò si determina da una modulazione della produzione della melanina dovuta a mutazioni che possono rendere meno efficiente l'enzima tirosinasi o qualsiasi altro intermedio/passaggio biochimico necessario affinche il suddetto amminoacido tirosina, acquisti colore fino a diventare eumelanina, la forma finale di questo processo. In realtà esiste anche un altro pigmento, la feomelanina dalle tinte rossastre, che segue un'altra via metabolica, che può rimanere e a sua volta mancare o essere presente in differenti gradazioni, ma la logica è sempre la stessa.
Nella Testudo hermanni, sono noti, ed in alcuni casi selezionati con successo, seppure con numeri estremamente bassi in virtù della limitata produttività ed i lunghi anni necessari affinche si raggiunga l'età riproduttiva, casi di albinismo T-. In condizioni di cattività questi mutanti non mostrano per altro particolari deficit o limitazioni, se non fosse per la maggior sensibilità dell'occhio alla luce intensa, che li porta a tenere un comportamento leggermente differente. Altra marcata differenza è la ridotta efficienza di termoregolazione. E' noto che il calore del sole sia più facilmente assorbibile dalle colorazioni scure, fatto questo che rende gli animali chiari più lenti a raggiungere le temperature fisiologiche quando il clima è meno favorevole, al risveglio dal letargo, nell'autunno o in condizioni di ridotta insolazione. Non è un caso che per esempio ad altitudini maggiori o in climi freddi, che i rettili mostrino un pattern mediamente più scuro rispetto a quello osservato nei climi caldi, dove lo scopo spesso si raggiunge riducendo, anche all'estremo, il disegno altrimenti tipico. Le classiche Testudo graeca golden, per intendersi, che con l'albinismo non hanno nulla a che fare, ma la pressione selettiva agisce nel favorire quegli esemplari che mostrano un disegno scuro ridotto, ne sono un classico esempio.
Un'altra mutazione che è stata rinvenuta in natura in Testudo hermanni hermanni, per altro con una frequenza elevata, è una forma in cui il disegno tipico della specie risulta a vari gradi fortemente sfumato, prendendo in prestito una parola dal soprannaturale, gost, fantasma. Probabilmente, la definizione più appropriata è isabella, ed è una mutazione autosomica recessiva, che cioè si presenta solo se entrambe le copie del gene che la determina sono mutate. In questo caso il portatore di un'unica copia mutata e di una normale, apparirà di colorazione normale. Sono molti gli allevatori che nei prossimi anni avranno le prime riproduzioni, ed è prevedibile che in un lasso di tempo ragionevole, questa particolare variante di colore diventi abbastanza comune e diffusa. A differenza dell'albino T-, essendo solo una lieve modulazione di colorazione, non ha particolari differenze di comportamento ed efficienza nella termoregolazione rispetto agli esemplari normali.
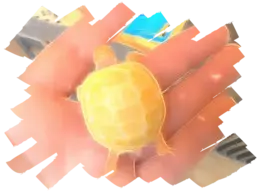
Quando invece troviamo un pattern alla nascita in tutto e per tutto simile ad un albino T-, con tanto di occhi rossi, ma con la crescita un accumulo di pigmentazione, seppur sfumata, evidentemente giallo scuro tendente al caramello, siamo di fronte ad una forma di albinismo parziale, dove presumibilmente la mutazione, sempre autosomica recessiva, interessa altri enzimi della catena che dalla incolore tirosina, porta alla colorata eumelanina. In questi casi, gergalmente, gli animali vengono definiti albino caramello o albini tirosinasi positiva, cioè presente e funzionante, T+. Considerato che alla nascita non vi è alcuna presenza di pigmento, è coerente supporre come sia l'alimentazione la fonte di intermedi alla base della comunque inefficiente produzione di colore di questi animali. Seppure tale mutazione si fosse verificata e selezionata su altre specie, come la Testudo marginata albino caramello e la Stigmochelys sulcata ivory, ormai abbastanza conosciute, di recente, la mutazione è stata fissata positivamente solo recentemente anche in Testudo hermanni, in particolare nella sottospecie occidentale, Testudo hermanni hermanni.
Il leucismo è anch'esso presente nelle tartarughe, e si riconosce per un pattern candido bianco e l'occhio nero, assenza completa o presenza puntiforme di aree pigmentate. Non ho notizie se non sporadiche, di nascite qua e là di esemplari del genere, ma non di allevamenti che ne abbiano intrapreso la riproduzione arrivando a nascite regolari ed una vera selezione. Non sono dunque noti i tassi di sopravvivenza, mentre sembra scontato che anche in questo casi si tratti di una mutazione autosomica recessiva.
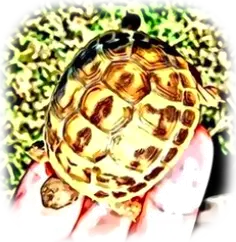
Infine vorrei spendere poche parole, per la verità, per quegli esemplari definiti high yellow, abbastanza comuni nelle Testudo hermanni boettgeri, che altro non sono che individui in cui le aree scure del disegno appaiono estremamente ridotte o assenti. Molti allevatori hanno provato a riprodurle ottenendo immancabilmente prole normale, fatto questo che lascia supporre come il particolare pattern derivi da una moltitudine di fattori/geni, che per esprimere il carattere debbano trovarsi in una rara combinazione. In un solo caso a me noto, ma evidentemente caratterizzato da una unica mutazione autosomica recessiva, si è riusciti a replicare il particolare pattern amelanico.


Definizioni ed approfondimenti
Albinismo: Carenza o assenza di pigmento melanina, che a sua volta ha differenti varianti. Erroneamente, l'albinismo è associato al colore candido ed all'occhio rosso, tuttavia non è corretto, in quanto esso può essere parziale, con un deficit di produzione di melanina, interessare per esempio solo alcune strutture come gli occhi, oppure semplicemente dare origine ad un mosaico. In ogni caso, specificando quale che sia il deficit, parliamo sempre di una forma di albinismo. Poichè il processo di produzione dei pigmenti è complesso, ci sono differenti pigmenti che seguono vie metaboliche spesso parallele, si capisce come e perchè la natura sia piena di varianti di colore e perchè ci siano infinite combinazioni possibili dovute non solo la presenza o assenza di un pigmento, ma al loro rapporto e modulazione.
Leucismo: l'assenza di pigmentazione è dovuta ad una mutazione che impedisce la formazione delle cellule deputate a produrre pigmento, tuttavia rimane la possibilità relativamente a strutture come l'iride di produrlo in quanto la via metabolica necessaria rimane integra e conservata. Da non confondere con l'albinismo, dove le cellule deputate alla produzione di pigmento sono perfettamente formate, ma una mutazione a carico della catena di eventi che porta alla produzione del colore, ne impedisce di portare a termine la via metabolica.
Un po' di genetica di base: il gene è l'unità fondamentale e funzionale del genoma, tuttavia ridurre tutto ad un solo gene quando parliamo di un particolare carattere è spesso riduttivo. Basta sapere che, sebbene basti la mutazione di un gene per cambiare un particolare carattere, di geni implicati in una particolare via metabolica ce ne possono essere tanti e svolgere reazioni consecutive e concatenate. Dunque si capisce bene come a seconda del gene mutato, ci possano essere differenze esteriori, anche se in teoria vanno ad interessare il medesimo processo, spesso divergenti fra loro. Tralasciando i casi in cui un particolare pattern richieda la concomitanza di più di un gene mutato, normalmente nel nostro quotidiano, le tartarughe, ci troviamo immancabilmente il caso di un unico gene mutato, poi a seconda di dove il fenotipo cambia, che ha la caratteristica di essere recessivo, cioè di manifestarsi solo se entrambe le copie, materna e paterna sono presenti in quel momento. Questo è il primo dato importante da comprendere, e cioè che l'assenza di un fenotipo mutato non indica l'assenza del gene mutante, ma che del resto non è quasi mai vero il contrario, trattandosi di mutazioni molto rare. Mi spiego meglio. Il gene mutato è recessivo, se in unica copia, il gene normale e funzionante supplisce completamente ed il fenotipo appare in tutto e per tutto normale. Questo è il caso di individui che avendo una sola copia mutata del gene di nostro interesse, vengono definiti eterozigoti per quel particolare carattere. Essi, trasmetteranno dunque a metà della loro prole il gene mutato che, pensandoci bene, nel caso per esempio di un maschio, parliamo di numeri spesso anche molto grandi. Considerato che dall'incrocio di due eterozigoti 1/4 dei piccoli avrà in media entrambe le copie mutate del gene ed un fenotipo per esempio albino, che 1/4 dei piccoli sarà portatore con entrambe le copie normali, ma soprattutto 1/2 sarà eterozigote, dunque i 2/3 dei piccoli nati con fenotipo "normale", si capisce l'importanza spesso altamente sottovalutata degli eterozigoti nella selezione di una variante di colore. Molti infatti si fermano al mutante in sé ed è questo il motivo del fallimento di molte selezioni. Il tutto in mancanza di queste nozioni di base importantissime. Molti infatti pensano che un esemplare di colore normale non possa dare origine ad un esemplare mutato, ma soprattutto che la nascita di mutanti possa essere un evento casuale che possa nascere da qualsiasi accoppiamento. Quindi chiarire i meccanismi alla base di questi semplici processi di selezione, permette per altro di fare acquisti ponderati e sicuramente proficui. Considerato il costo inferiore degli esemplari eterozigoti, ovviamente con la certezza che lo siano acquistandoli da allevamenti professionali come Testudoalbino, questo è un modo indiretto ed economico per ottenere la variante di colore desiderata.
Note ed approfondimenti sulle varianti di colore di Testudo marginta
In Testudo marginata, l'unica variante di colore al momento nota e riprodotta da decenni, per altro presente in natura con una certa frequenza e registrata, anche se non riconosciuta, in alcune collezioni museali, è la forma T+, definita albino caramello. A causa dell'assenza di pigmentazione nelle prime fasi/anni di vita, come nel caso dell'albinismo T-, l'animale dimostra una ridotta efficienza di termoregolazione che però con il tempo e il viraggio del colore verso il noto caramello, va ad annullarsi completamente. L'occhio, inizialmente rosso, tende a rimanere nocciola chiaro, ed è normalmente la prima struttura che scurisce, non creando per altro problemi di visione alle alte luci come nelle mutazioni dove permane depigmentato/rosso. Sono animali ormai riprodotti positivamente da decenni con più generazioni, 3 allo stato attuale, che hanno dimostrato un tasso di sopravvivenza paragonabile al pattern tipico anche in natura in virtù probabilmente di un certo vantaggio nei terreni brulli e con vegetazione secca, dove si mimetizzano più efficacemente. L'unica accortezza, i primi anni, è quella di garantirgli una maggiore protezione in virtù delle ridotte capacità di termoregolazione fin quando non raggiungono un minimo di pigmentazione.
La storia sulla selezione della Testudo marginta albino caramello
Fu
una sorpresa il 10 settembre del 1991 trovare una piccola Testudo
marginata bianca come il latte nata insieme ad altre 8 piccole
tartarughe in giardino. Era una deposizione che non ero riuscito ad
individuare, mentre le altre erano tutte in incubatrice. A breve si
sarebbero schiuse le ultime uova rimaste di una femmina
contrassegnata con la lettera N. Pochi giorni dopo da un uovo di
questa ultima venne fuori un’altra piccola tartarughina bianca con
gli occhi color brace. La Femmina N di colorazione assolutamente
normale ne era la madre, e proveniva dalla zona di Olbia (Sardegna,
Italia) da dove era stata prelevata almeno 20 anni prima da alcuni
amici che l’anno prima se ne erano disfatti regalandomela insieme
ad altri esemplari della stessa specie. Chi poteva essere il padre?
Da subito pensai si trattasse di un giovane maschio color ocra
chiaro, occhi grigi chiari mancante completamente di colorazione
nera. Anche lui trovato anni prima nella zona di Olbia in Sardegna.
Era Albino! Negli anni successivi nacquero in tutto 14 piccoli
albini, ma di questi ne sono rimasti ad oggi solo sette, 6 maschi ed
una sola femmina, nati nel 1996 e 1997. In questo ultimo anno morì
per una polmonite fulminante, poco dopo il risveglio dal letargo, il
padre di queste. Qualche settimana prima che morisse riuscii comunque
a farlo accoppiare con la femmina eterozigote e da una deposizione di
11 uova nacquero 5 albini, prova dell’albinismo del maschio e
dell’etereozigosi della femmina.
Da
allora non nacque più nulla, fino allo scorso settembre 2003 quando
da due piccolissime uova di una figlia della femmina N nata nel 1996,
uscirono due altrettanto piccole testudo marginata albine. Anche
questa era eterozigote e si era accoppiata con i fratelli albini nati
lo stesso anno, finalmente maturi sessualmente. Erano passati 12 anni
dalla prima nata e avevo voluto con tutto me stesso riuscire a
selezionare il primo ceppo albino di Testudo marginata: ci ero
riuscito. Quest’anno (2004) sono riuscito a far fecondare la
femmina N eterozigote e la figlia dai 2 maschi albini nati nel 1996
ed attualmente ho in incubazione 28 uova di entrambe. Ma la sorpresa
più grande è stata la prima deposizione da parte dell’unica
femmina albina nata nel 1997 di cui ho in incubazione 5 uova.
Quando
l’attesa del periodo d’incubazione è poi finita, hanno iniziato
a schiudersi le prime uova. Testudo marginata, tra i 30-32° C
impiega 58-64 giorni a schiudere. Delle 8 uova feconde della giovane
femmina eterozigote deposte a fine maggio, 6 sono arrivate alla
schiusa e 2 avevano embrioni morti al loro interno di colorazione
normale. Delle nate, 2 erano di colore normale e 4 albine:
esattamente quanto mi sarei aspettato da una normale segregazione di
geni Aa X aa (eterozigote per albino). Le uova deposte nella seconda
deposizione erano 12, di queste solo 6 fecondate. Sono nati 3
esemplari di colore normale e 2 albini: nell’uovo che non si è
schiuso ho trovato un piccolo embrione bianco.
La
femmina N, la madre dei primi albini, ha deposto 2 volte, 12 uova
ciascuna deposizione. In entrambi i casi la fertilità è stata bassa
e solo 8 sono risultate fecondate. Molto probabilmente ciò è dovuto
alla giovane età dei maschi, nati nel 1996 (anno 2004).
La
giovanissima ed unica femmina albina, nata nel 1997, ha deposto
un’unica volta 8 uova molto piccole. Anche in questo caso solo 4
erano fecondate: se ne sono schiuse 3, dando alla luce 3 esemplari
albini di piccolissime dimensioni (22 mm ciascuno); nell’uovo
abortito vi era un embrione bianco. Anche in questo caso ho trovato
quanto mi sarei aspettato per una segregazione recessiva per
l’albinismo (aa X aa).
Si
tratta di una mutazione recessiva che segue le leggi di Mendel.
Particolarità
di questa mutazione, è quella che gli esemplari accumulano pigmenti
giallo chiari a partire da un paio di mesi dalla nascita: gli occhi
progressivamente diventano color nocciola chiaro e questo li rende
meno sensibili ai raggi UV, tanto che vivono come gli esemplari di
colorazione normale. Tuttavia appaiono molto chiari con la
colorazione della specie sfumata.


